SLAC1——从一株"长斑"的拟南芥,到一个离子通道
精读 Vahisalu et al. (2008) Nature:正向遗传学锁定植物保卫细胞 S 型阴离子通道 SLAC1 的完整故事线
一、从一个日常现象开始:气孔是怎么关上的#
植物叶片上的气孔由两个保卫细胞围成,它控制气体的进出和水分的流失——蒸腾作用的水汽,就是从这道”闸门”出去的。
那么气孔的开闭由什么决定?核心概念只有一句话:吸水和失水,本质上由细胞内溶质分子的数量决定。细胞内溶质多、渗透压高,水就进入细胞,细胞膨胀,把气孔撑开;溶质少,水往外走,细胞失水收缩,气孔关闭。
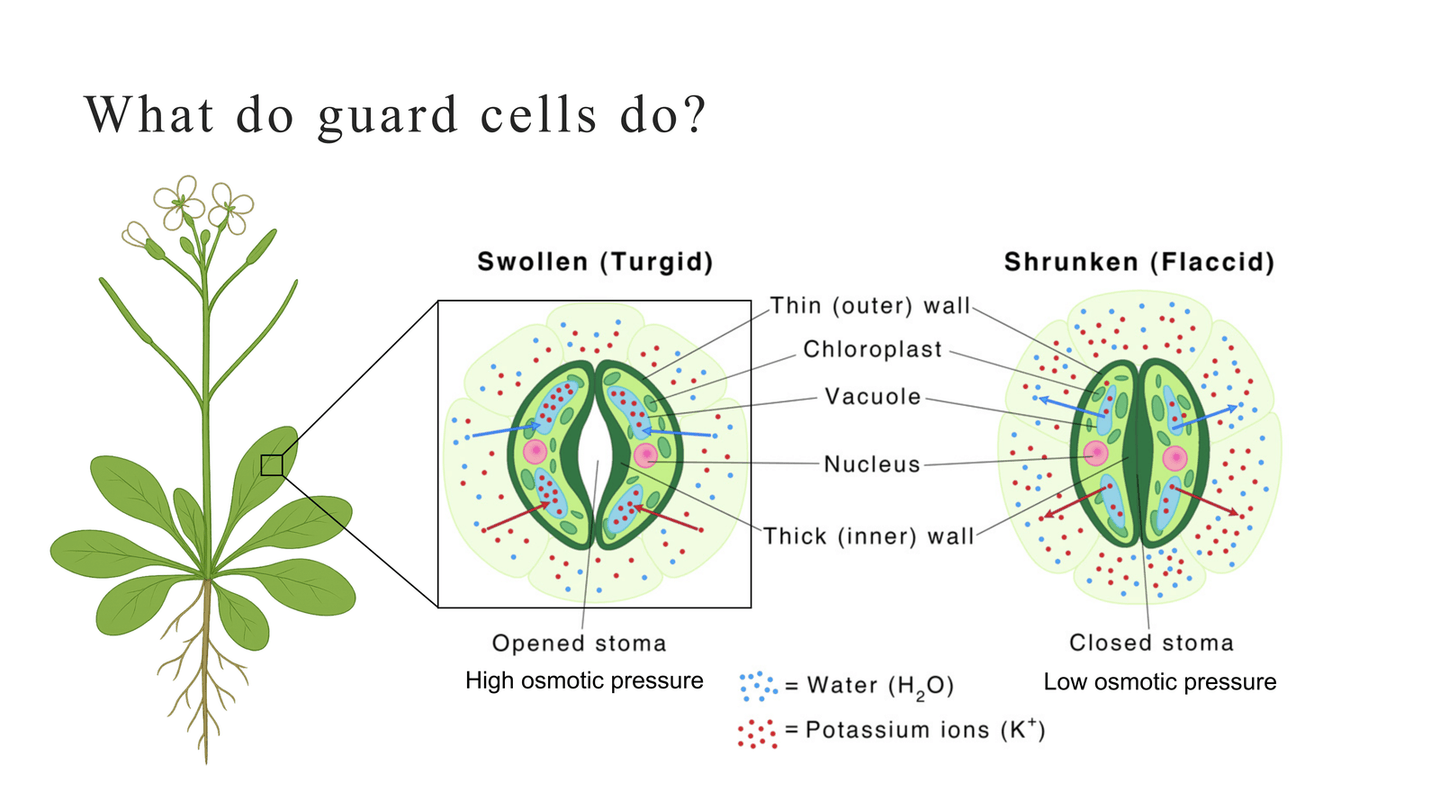
保卫细胞的吸水与失水决定气孔开闭
那谁在调控溶质的进出?这就轮到主角登场了。整个失水过程分五步:
- 细胞膜上的 H⁺-ATPase 不断把氢离子泵到细胞外,维持膜内的负电势;
- 胁迫信号(ABA、ROS、NO、CO₂)引起 Ca²⁺ 内流,激活阴离子通道;
- 阴离子通道打开,Cl⁻ 等阴离子外流,膜去极化;
- 去极化作为”开关”激活 GORK 钾通道,K⁺ 持续外流;
- 溶质流失、渗透压降低、水外流——气孔关闭。
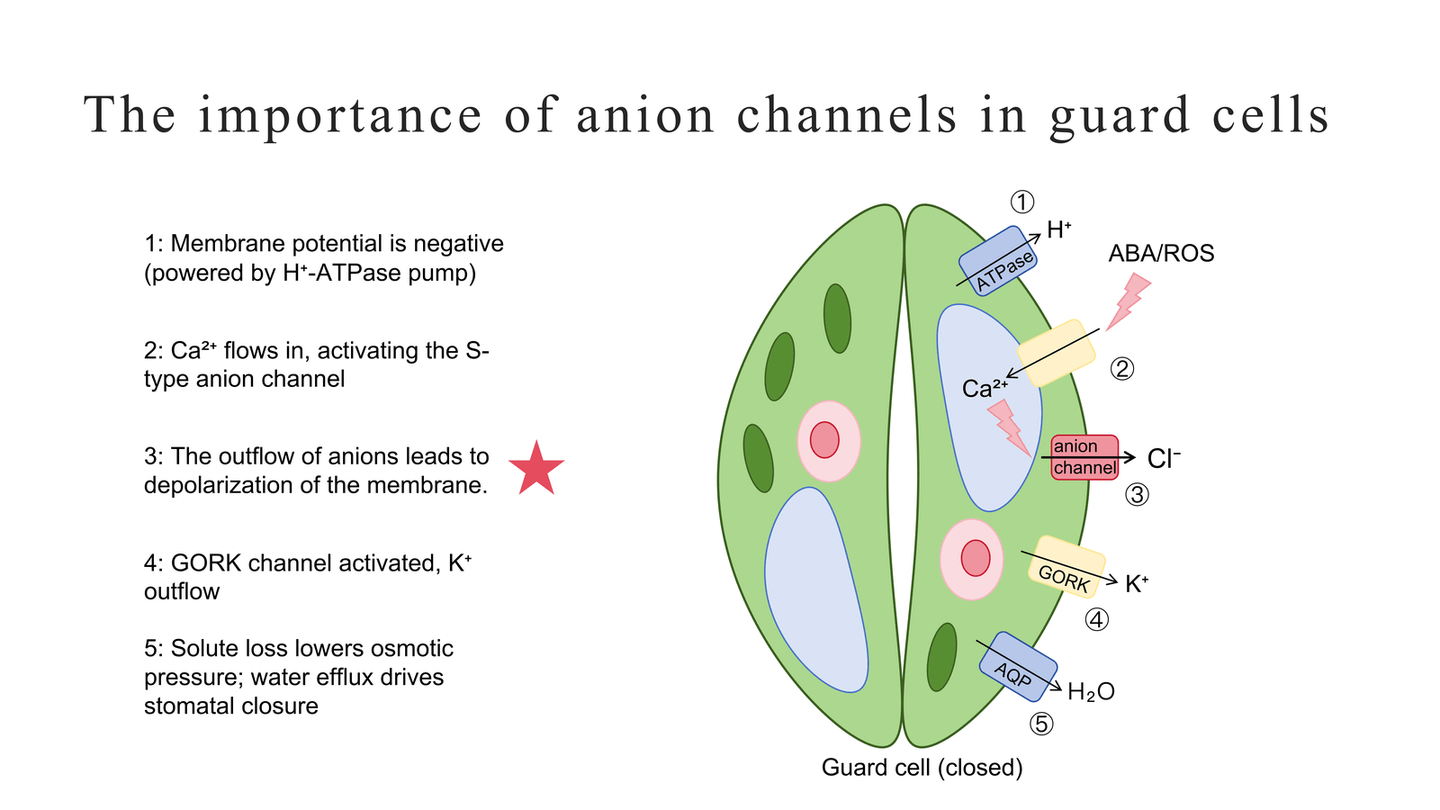
气孔关闭的五步级联:第 3 步的阴离子通道是整个级联的 switch
这五步里最关键的是第 3 步:阴离子通道充当整个级联反应的开关,把后续所有过程打开。
二、一个悬而未决的问题:通道是谁#
这个阴离子通道的存在早有电生理学证据,但”它到底是哪个蛋白”一直是个谜。人们一开始的思路是在动物细胞里找同源蛋白,候选是 AtCLCa——但验证发现两条都对不上:定位不对(它在液泡膜上而不是质膜),运的东西也不对(它是 H⁺/NO₃⁻ 反向转运体,是双向交换而非单向阴离子外排)。
保卫细胞质膜上的 S 型阴离子通道,到底是谁?这正是这篇论文要回答的问题。
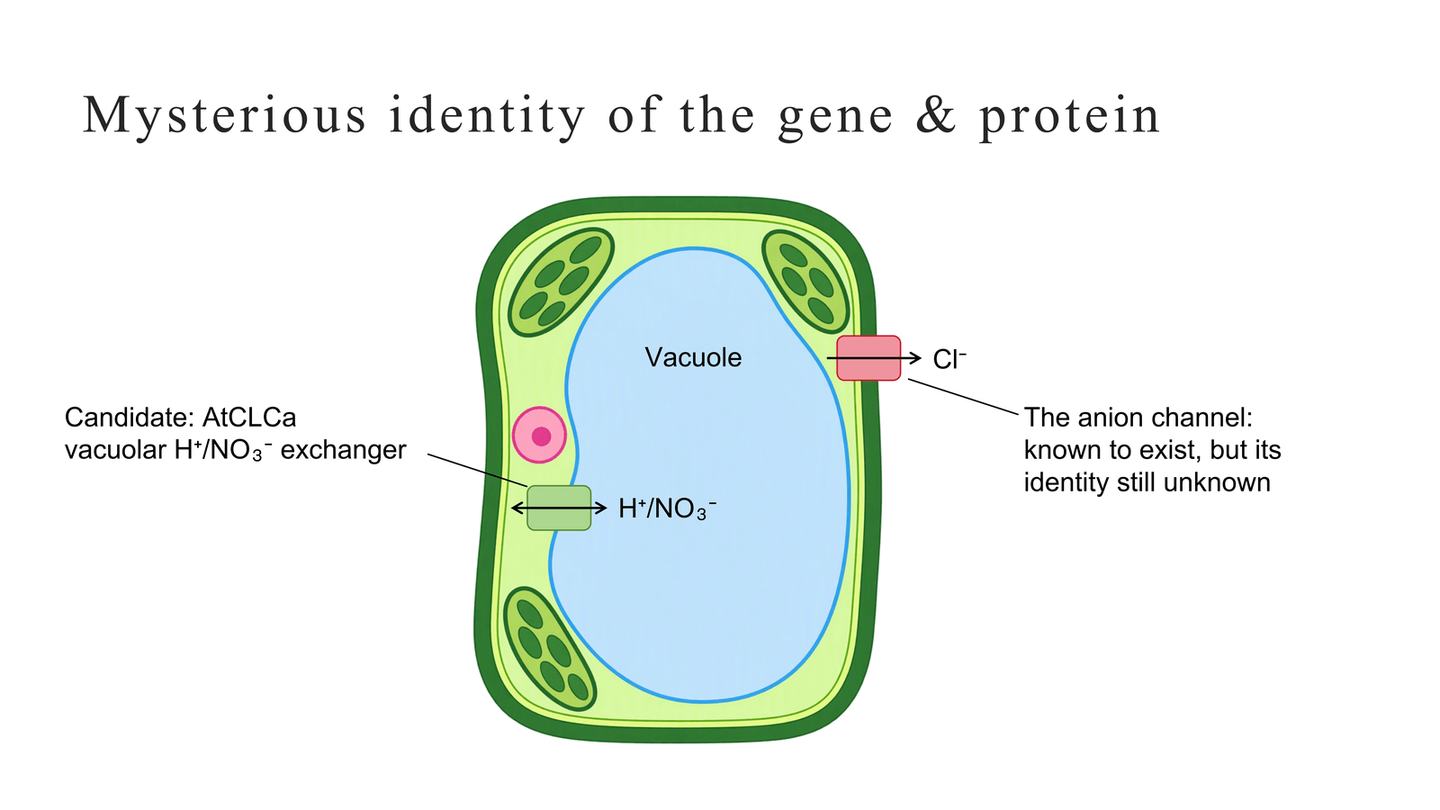
候选 AtCLCa 因定位和功能不符被排除
三、正向遗传学:从一株”长斑”的拟南芥开始#
研究者的策略是经典的正向遗传学:从表型出发找基因。
首先用 EMS(甲基磺酸乙酯)做化学诱变。EMS 会让 DNA 中的鸟嘌呤发生烷基化,复制时错配为与胸腺嘧啶配对,最终造成 G:C → A:T 的碱基置换,高效产生点突变。诱变后的 M1 代突变是杂合的,所以自交得到 M2 代再筛选。
筛选压力用的是臭氧——臭氧会诱导 ROS(活性氧)产生,对 ROS 防御有缺陷的植株,叶片上会出现细胞死亡的黄斑。这个设计思想很巧妙:用”气孔失控 → 臭氧进得多 → ROS 敏感”来间接钓取气孔调控基因。研究者还用离子渗漏(ion leakage)定量细胞死亡程度:细胞死了、膜破了,内容物就会漏出来。
这个突变体最初叫 rcd3(radical-induced cell death),在这篇文章里被重新命名为 slac1——slow anion channel-associated。
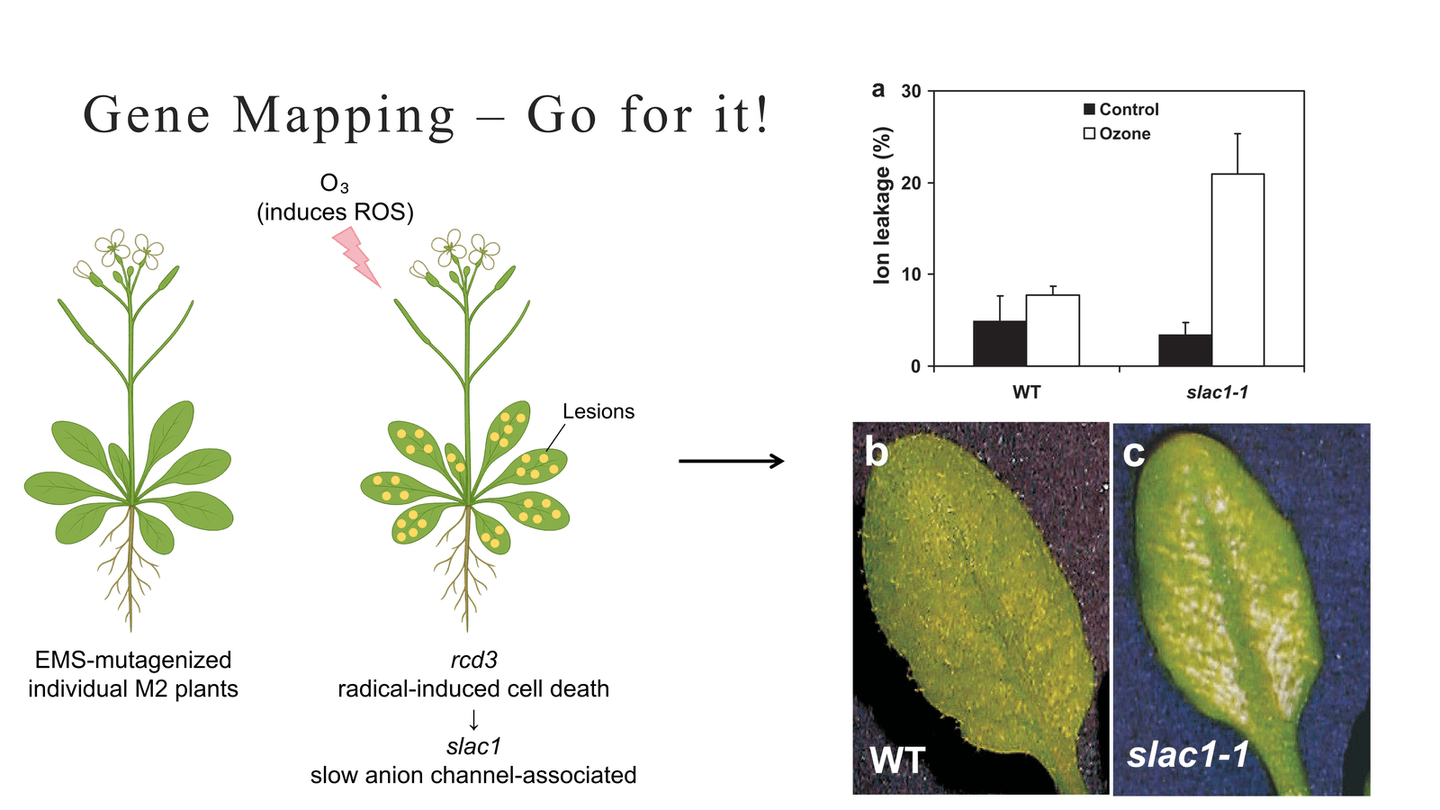
EMS 诱变 + 臭氧筛选:rcd3 → slac1
在动手定位之前,还要先回答一个逻辑问题:这个表型是一个基因导致的,还是多基因的整体现象?把突变体与野生型杂交,后代 3/4 正常、1/4 长斑——完美符合孟德尔定律。因此,我们得到了两个重要结论:
- 这是单基因隐性突变,只有纯合个体才表现表型;
- 臭氧敏感性总是和气孔关不上、失水的表型共分离——两者由同一个基因控制。
从此,这个突变等位基因有了正式名字:slac1-1。
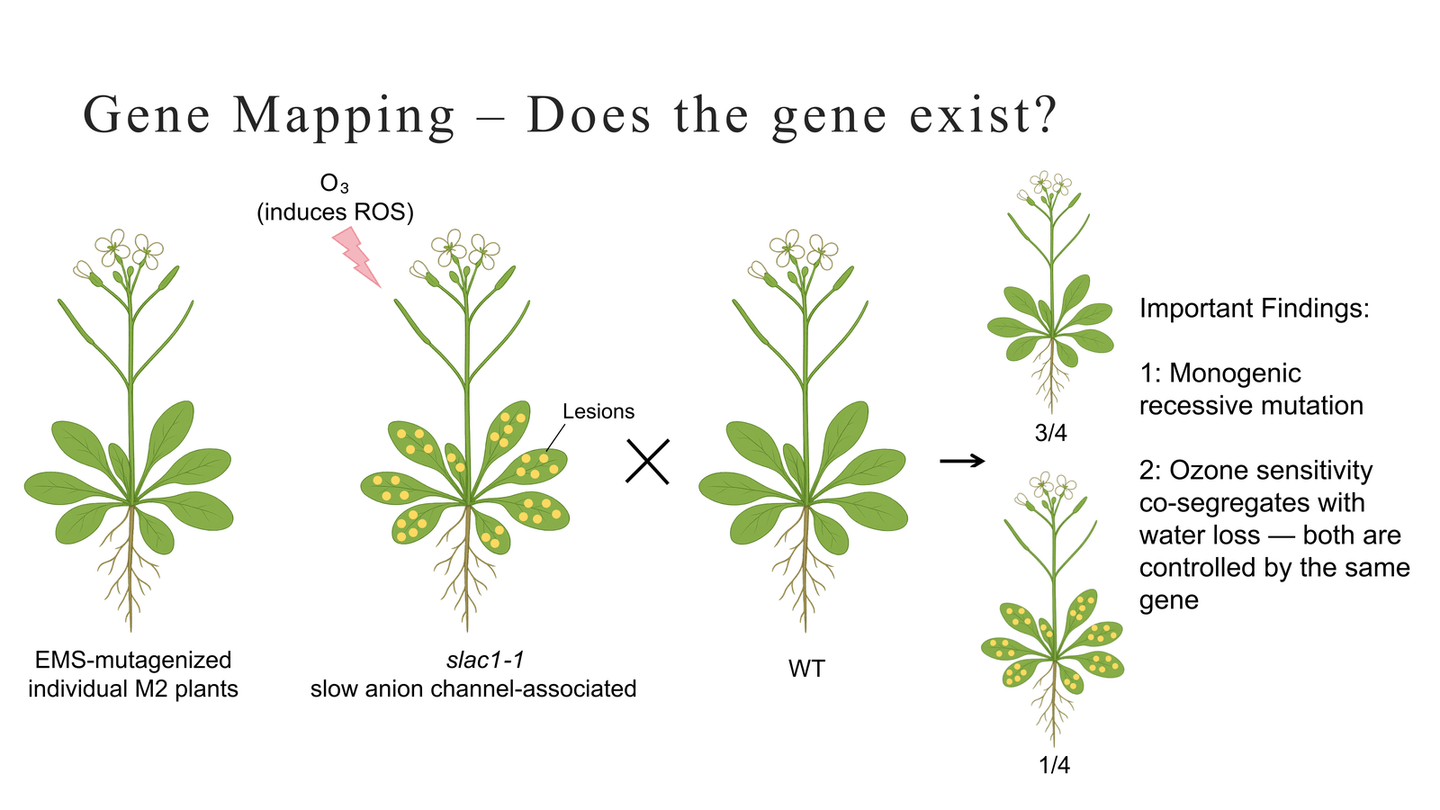
3:1 分离比确认单基因隐性突变
四、图位克隆:把基因”夹”出来#
接下来是整个研究最漂亮的部分。研究者把 Col-0 背景的突变体和 Ler 生态型(波兰背景)杂交,F1 自交得到 F2 作图群体。两个生态型之间存在大量天然 SNP(单核苷酸多态性),可以当”路标”使用。
关键的遗传学逻辑是:减数第一次分裂前期(粗线期),同源染色体的非姐妹染色单体发生交叉互换,F2 的染色体成了两种背景拼接的”马赛克”。而由于表型是隐性的,表现出失水/斑点的 F2 植株,在 slac1 位点上必定是纯合 Col-0 背景——这就给出了极其便利的筛选条件:专挑蔫的、长斑的植株。研究者最终筛到了 572 株这样的 F2。
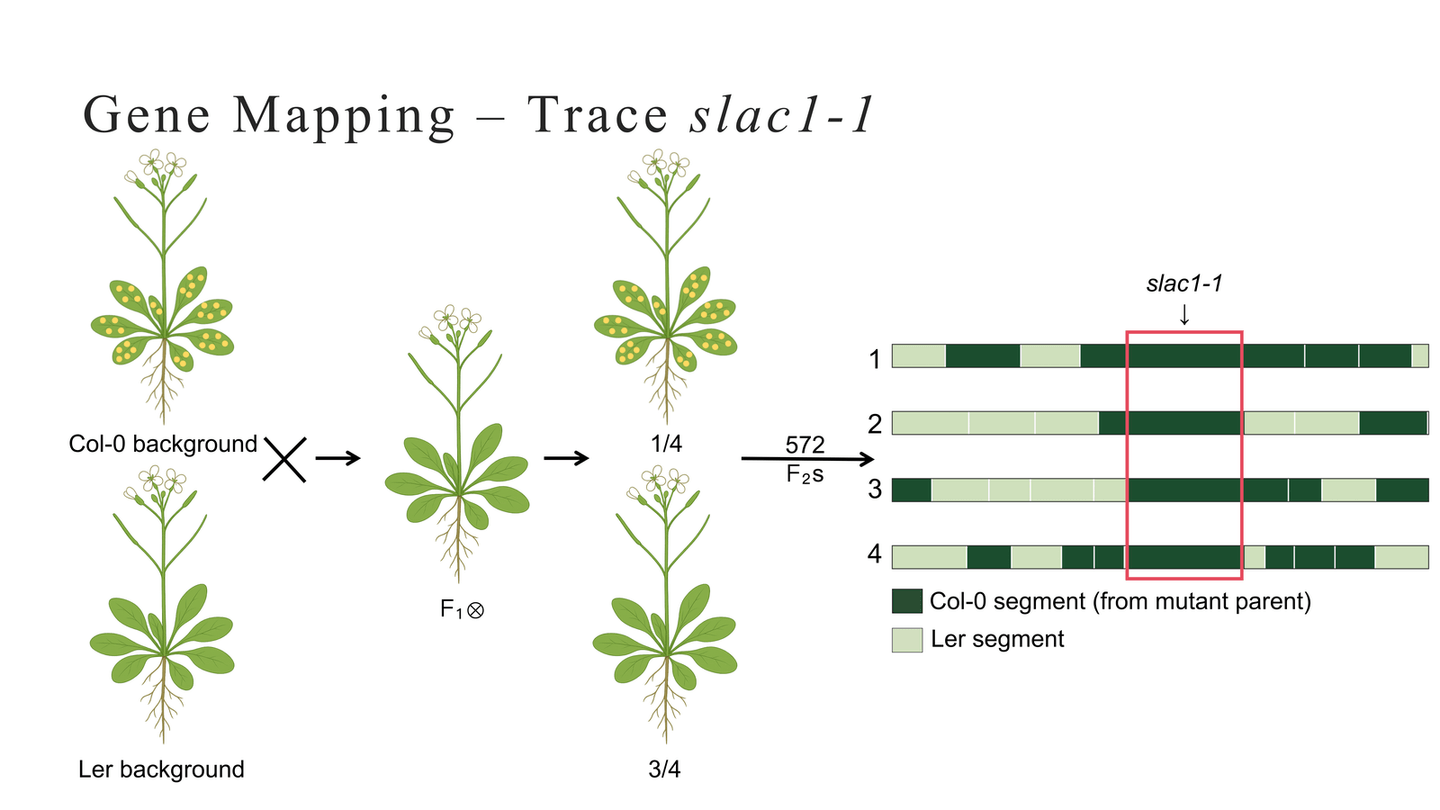
Col-0 × Ler 作图群体:患病 F2 在 slac1 位点必为纯合 Col
怎么利用 SNP 鉴定纯合性?用 CAPS 标记。以限制性内切酶 EcoRI 为例:它识别 GAATTC 并切开;如果 Ler 背景中这个位点变成了 GATTTC,酶就切不动。PCR + 酶切 + 跑胶后:Col 纯合是 300+200 bp 两条带,杂合是三条带,Ler 纯合是 500 bp 一条带。然后看连锁:标记离位点远,三种基因型比例约 1:2:1(随机重组);越靠近位点,越是清一色 Col/Col;标记若就在位点上,572 株全部 Col/Col。
就这样一路收窄,最终用 SGCSNP9727 和 SGCSNP9735 两个标记,把区间夹在 1 号染色体上 116.5 kb 的范围内——里面有 34 个基因。
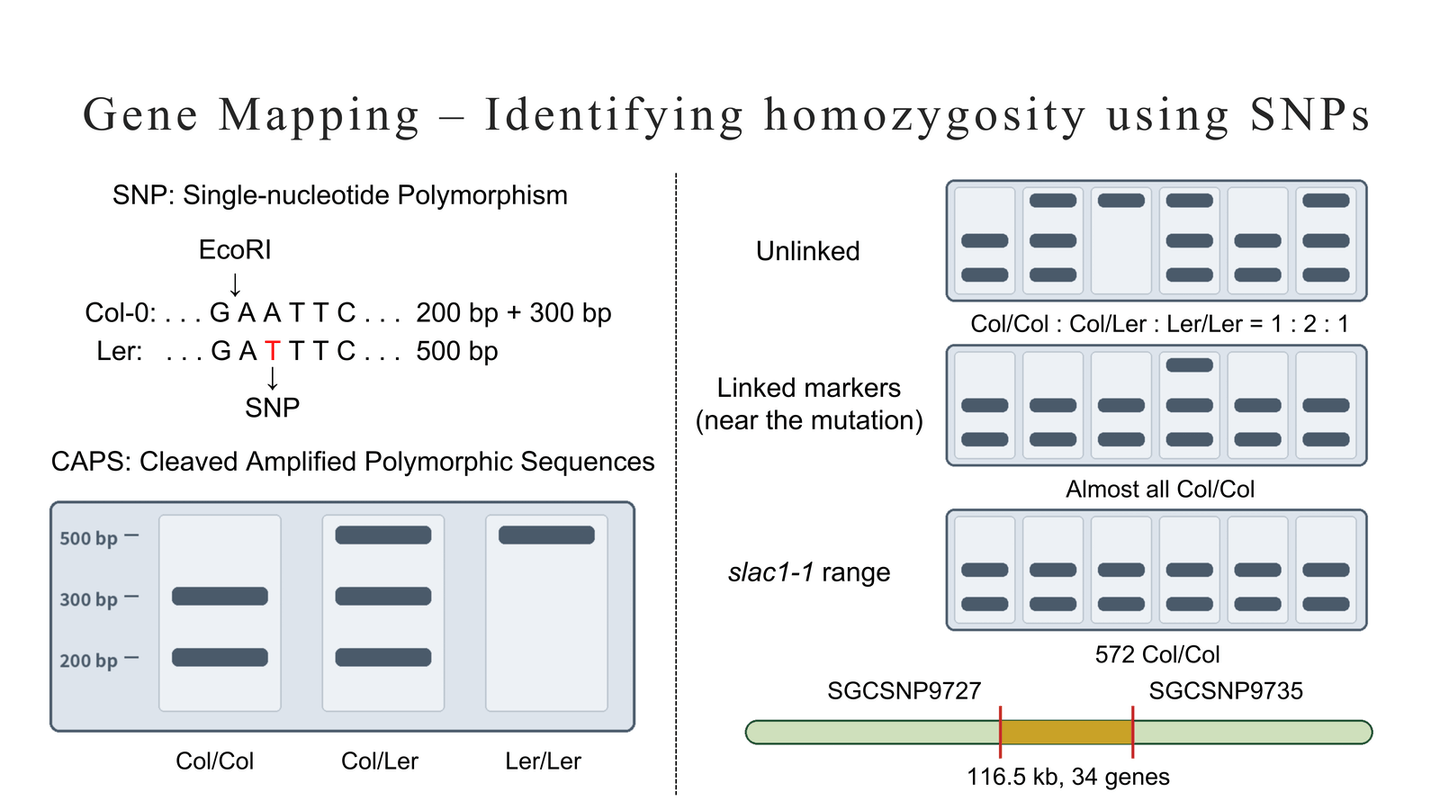
用 CAPS 标记把区间收窄到 116.5 kb、34 个基因
五、锁定 At1g12480#
34 个基因里哪个是答案?回到研究对象本身——我们研究的是保卫细胞,那就看谁只在保卫细胞里干活。
研究者把候选基因的启动子接上 GUS 报告系统(uidA 基因编码 β-葡萄糖醛酸酶,催化底物变蓝),染色后表达部位一目了然;再结合已有的保卫细胞/叶肉细胞基因芯片数据:34 个基因里,只有 At1g12480 在保卫细胞中的表达量比叶肉细胞高 10 倍以上。两条证据完全吻合。
At1g12480 这个名字其实是”门牌号”:At = 拟南芥(Arabidopsis thaliana),1 = 1 号染色体,g = gene,12480 = 基因序号。
怎么最终确认?研究者直接订购了 T-DNA 插入突变体(农杆菌 T-DNA 插入基因组打断基因)。结果,插在 At1g12480 里的两个株系(后来的 slac1-3 和 slac1-4)表现出和 slac1-1 一模一样的表型——这叫表型复制(phenocopy):独立来源的损伤打到同一个基因、得同样的病,是”找对基因”最有力的遗传学证据。
最后测序收尾:Sanger 测序发现编码区一个 C→T 单碱基替换——正好呼应 EMS 的诱变机制。第 456 位密码子从 TCT(丝氨酸)变成 TTT(苯丙氨酸),即 S456F 错义突变,蛋白失去功能。证据链完全闭环。这个蛋白有 10 个预测跨膜结构域,突变位点就标注在疏水性图上。
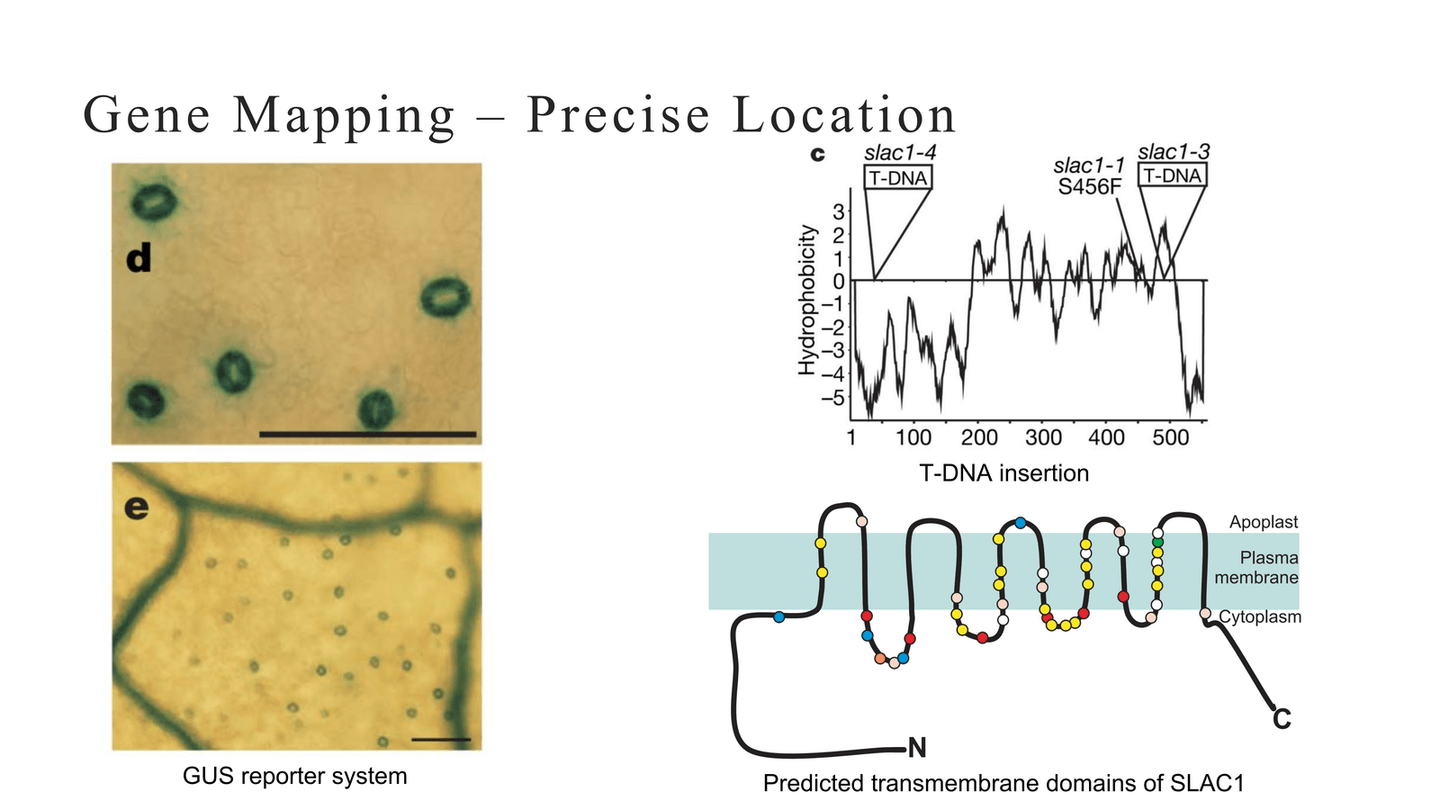
GUS 报告系统 + T-DNA 验证 + 跨膜结构预测
顺带一提,这个研究也集中体现了拟南芥作为模式生物的四大优势:生命周期短(几个月拿到 572 株 F2)、生态型多(Col/Ler 提供天然 SNP 标记)、基因组早已测完(区间一定,候选基因立刻列出)、有公共 T-DNA 突变体库(想验证哪个基因直接订种子)。
拟南芥的四大优势在这项研究中全部用上了
六、蛋白在哪里:洋葱表皮与赫氏丝#
基因找到了,接下来看蛋白在哪里。注意:这个实验用的不是拟南芥保卫细胞,而是洋葱内表皮细胞——保卫细胞只有十几微米,又小又难做瞬时转化;洋葱表皮是天然的单层大细胞,撕下来就能做基因枪转化,当天出结果,还没有叶绿体自发荧光干扰。
研究者把 SLAC1 与 GFP 融合表达,再用膜染料 FM4-64 共染,merge 后信号重合——初步提示在质膜上。但这还不够,贴壁内侧的也可能是别的膜结构。决定性证据来自质壁分离:细胞失水后原生质体向内收缩,但质膜在某些锚定位点仍连着细胞壁,被拉成一根根细长的膜丝——这就是赫氏丝(Hechtian strands),本质上是质膜的延伸。荧光出现在这些细丝上,说明蛋白跟着质膜走,而不是附着在细胞壁上。
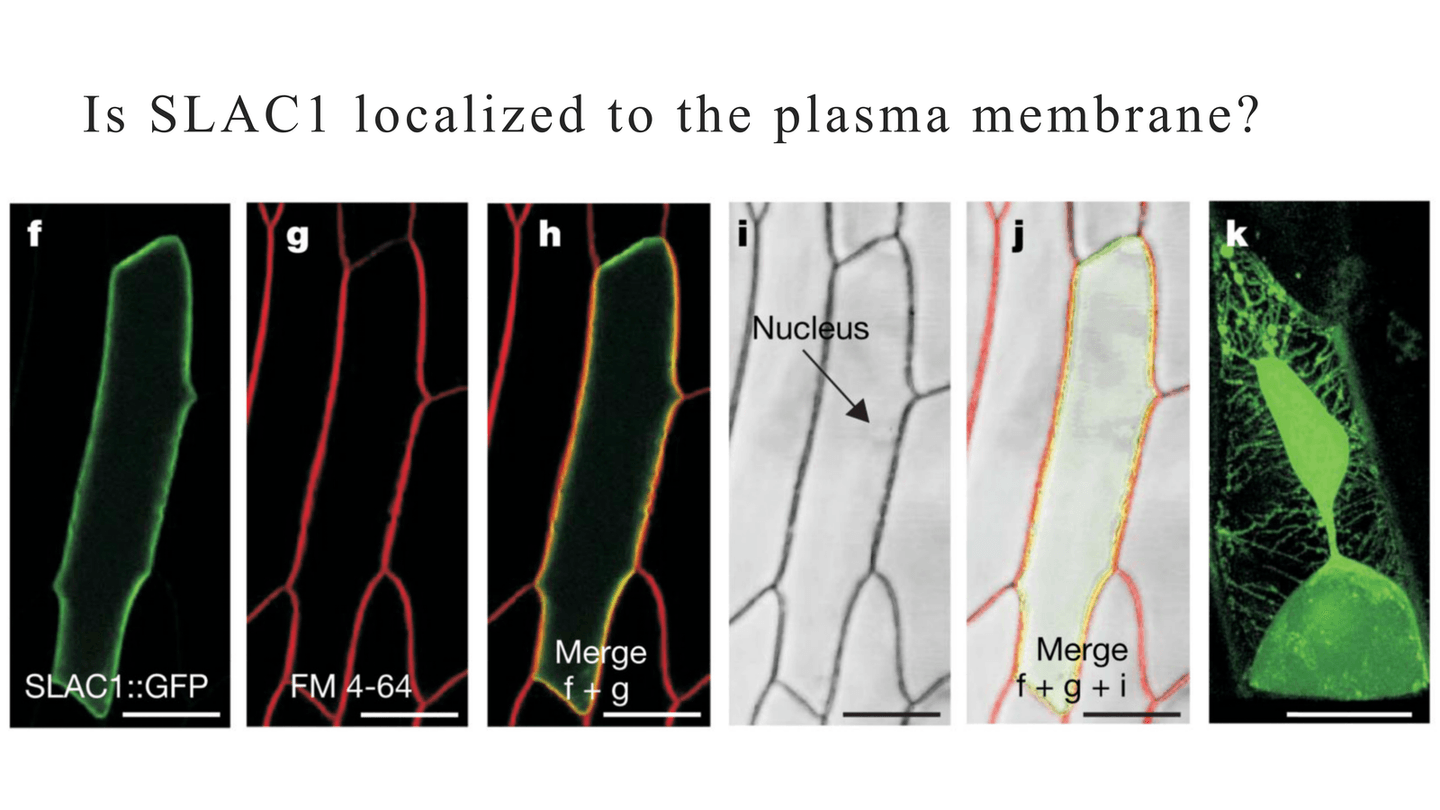
GFP 共定位 + 质壁分离后的赫氏丝,确证质膜定位
七、从基因型回到表型,再到电生理#
之前的路线是”从表型到基因型”;接下来反过来走:从基因型回到表型。
环境刺激下,突变体的气孔响应全面迟钝:光照变化、湿度下降、CO₂ 升高(400 → 800 ppm),野生型气孔迅速关闭,突变体几乎不动。
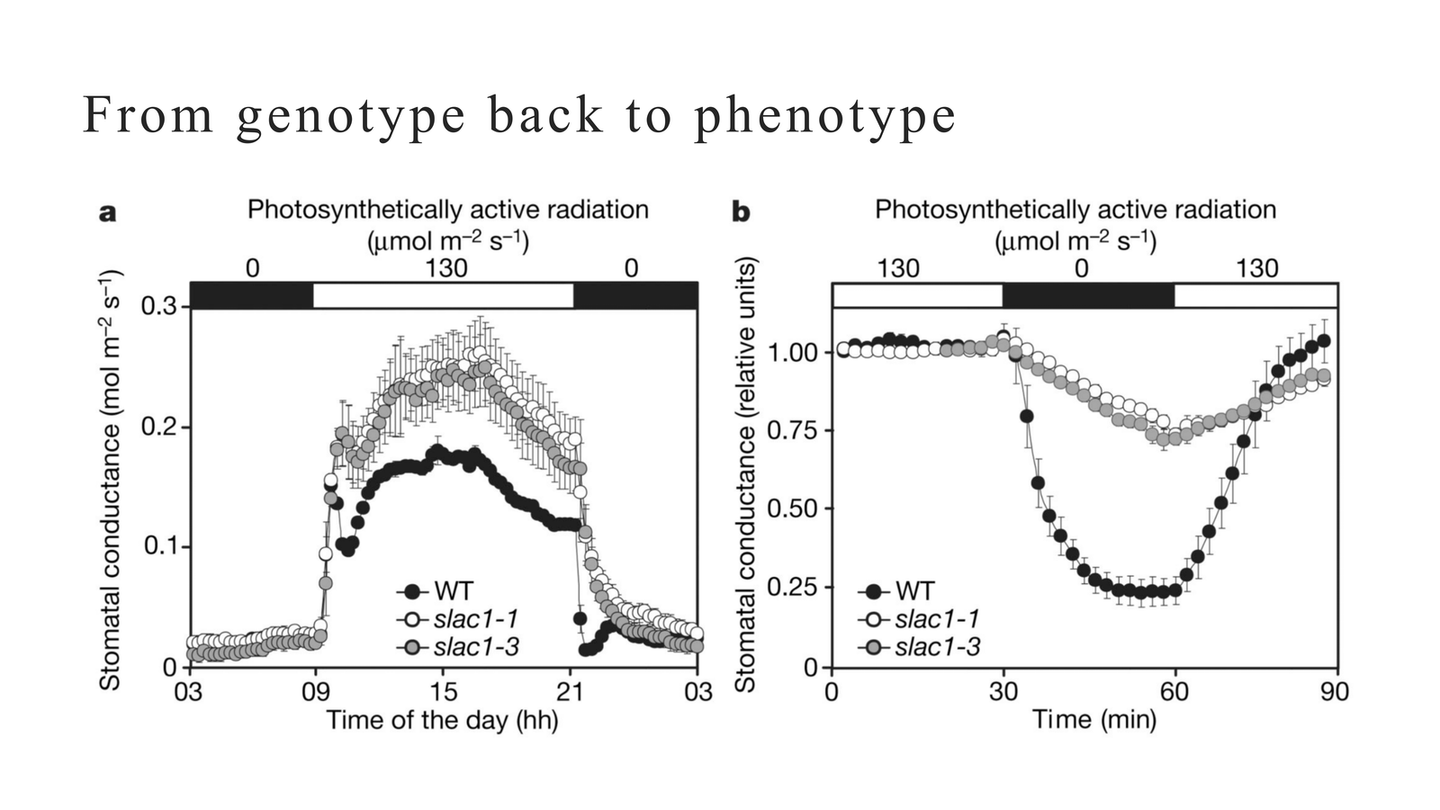
光照变化下,野生型气孔导度快速下降又回升,突变体响应迟钝
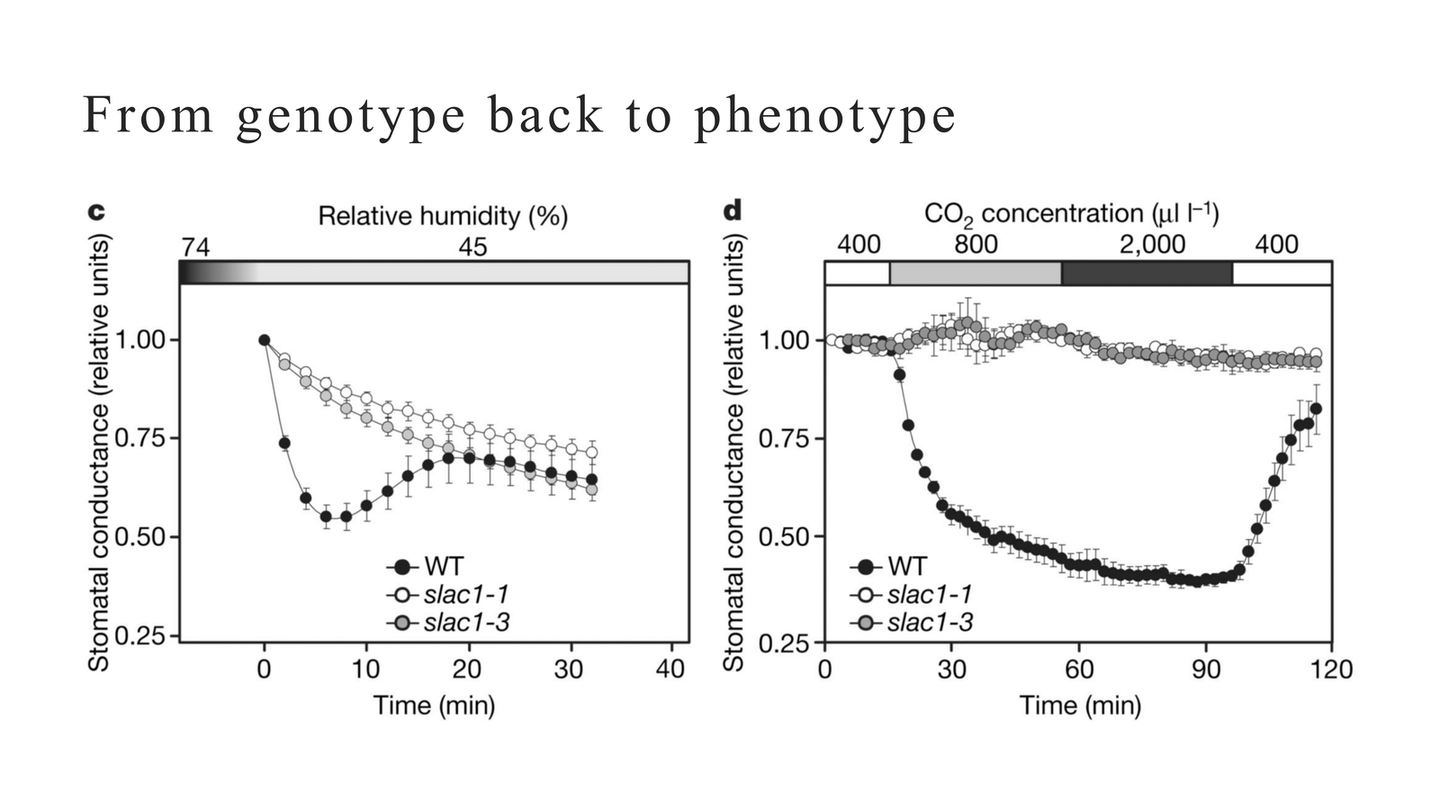
湿度下降、CO₂ 升高时,突变体气孔几乎不响应
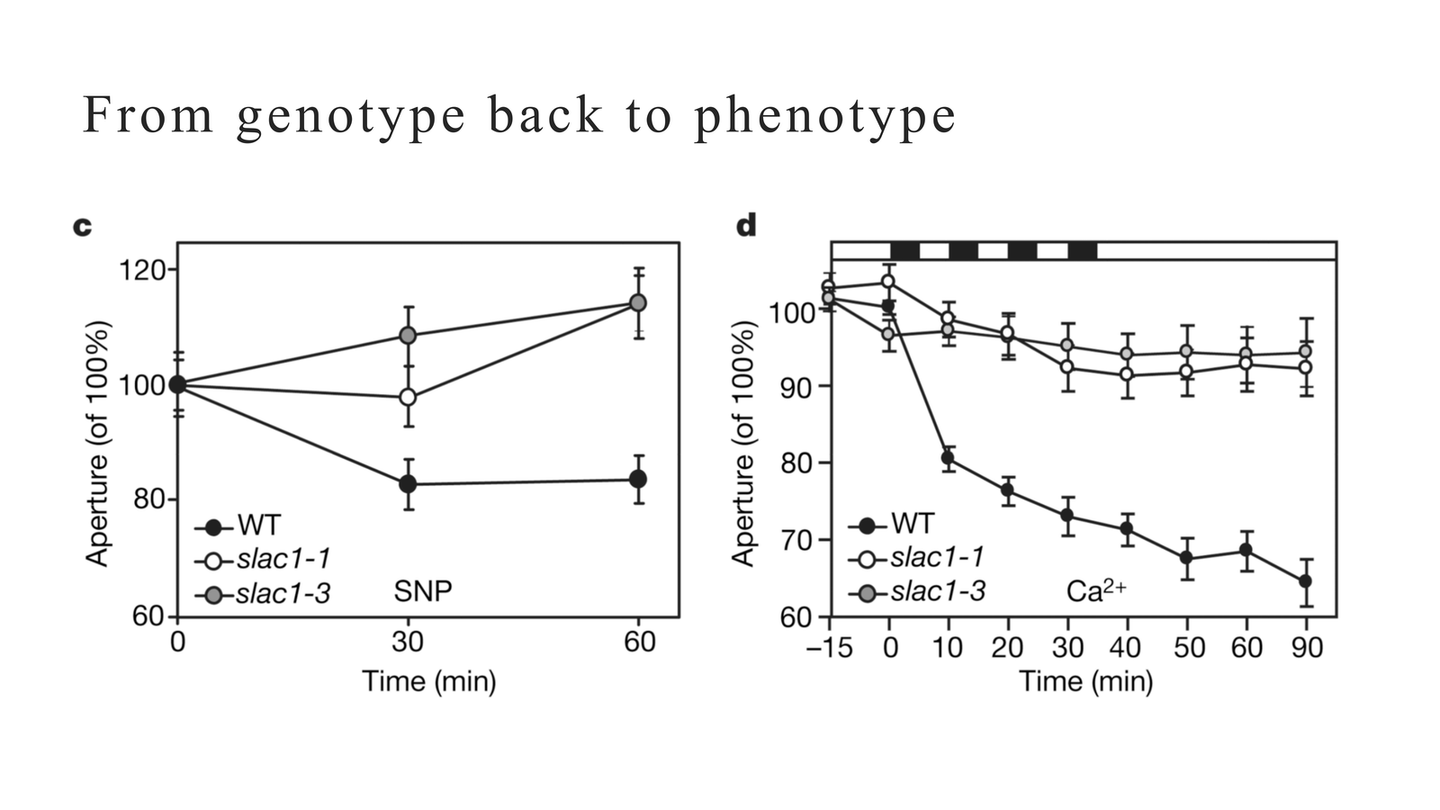
信号分子层面,ABA、H₂O₂、硝普钠(SNP,一氧化氮供体——注意此 SNP 非彼 SNP)、Ca²⁺ 脉冲,结果都一样。
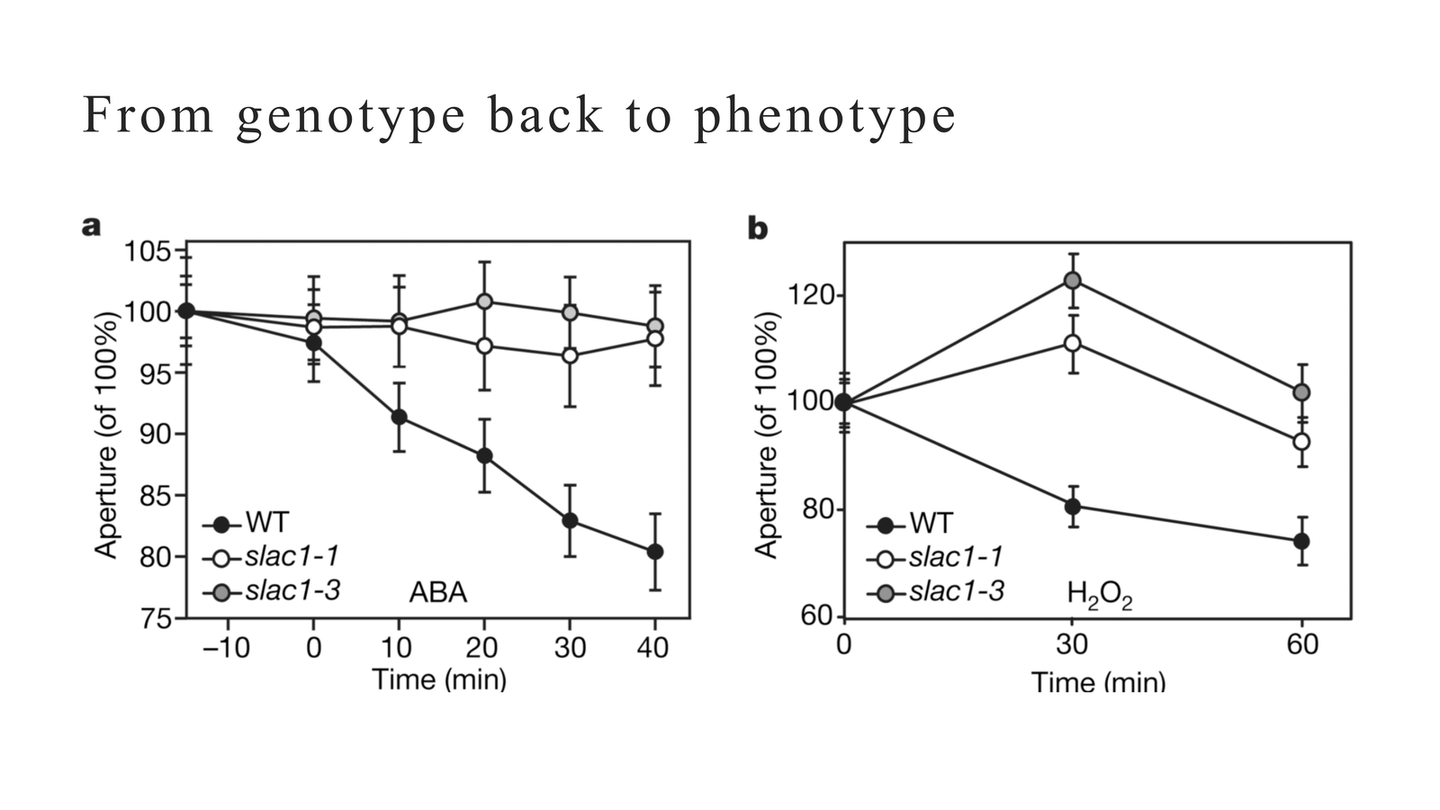
ABA、H₂O₂ 处理下突变体同样迟钝
但请注意:这些全是间接证据。我们想研究的是阴离子外流,目前却只看到了表型。要下结论,必须直接看电生理学证据——膜片钳。
先学读图:研究者把膜电位钳住,瞬间跳到某个测试电压保持几秒,记录电流,一条曲线就是一个电压阶梯。图里越靠下的曲线对应越负的电压,曲线往下沉得越多 = 内向电流越大(负电荷流入,等价于阴离子外流——正是 S 型通道开放时 Cl⁻/苹果酸根排出的过程)。再看时间形状:跳电压后电流花一两秒慢慢爬升、持续不衰减——这就是 “S-type = slow” 命名的由来,是这个通道的”指纹”。
结果一目了然:在 2 µM Ca²⁺ 激活条件下,野生型出现大而缓慢的 S 型电流;而 slac1-1(点突变)和 slac1-3(T-DNA 插入)几乎全是平线。两个分子机制完全不同的独立突变体表现一致——这就是”就是这个基因负责这个通道”的核心证据。
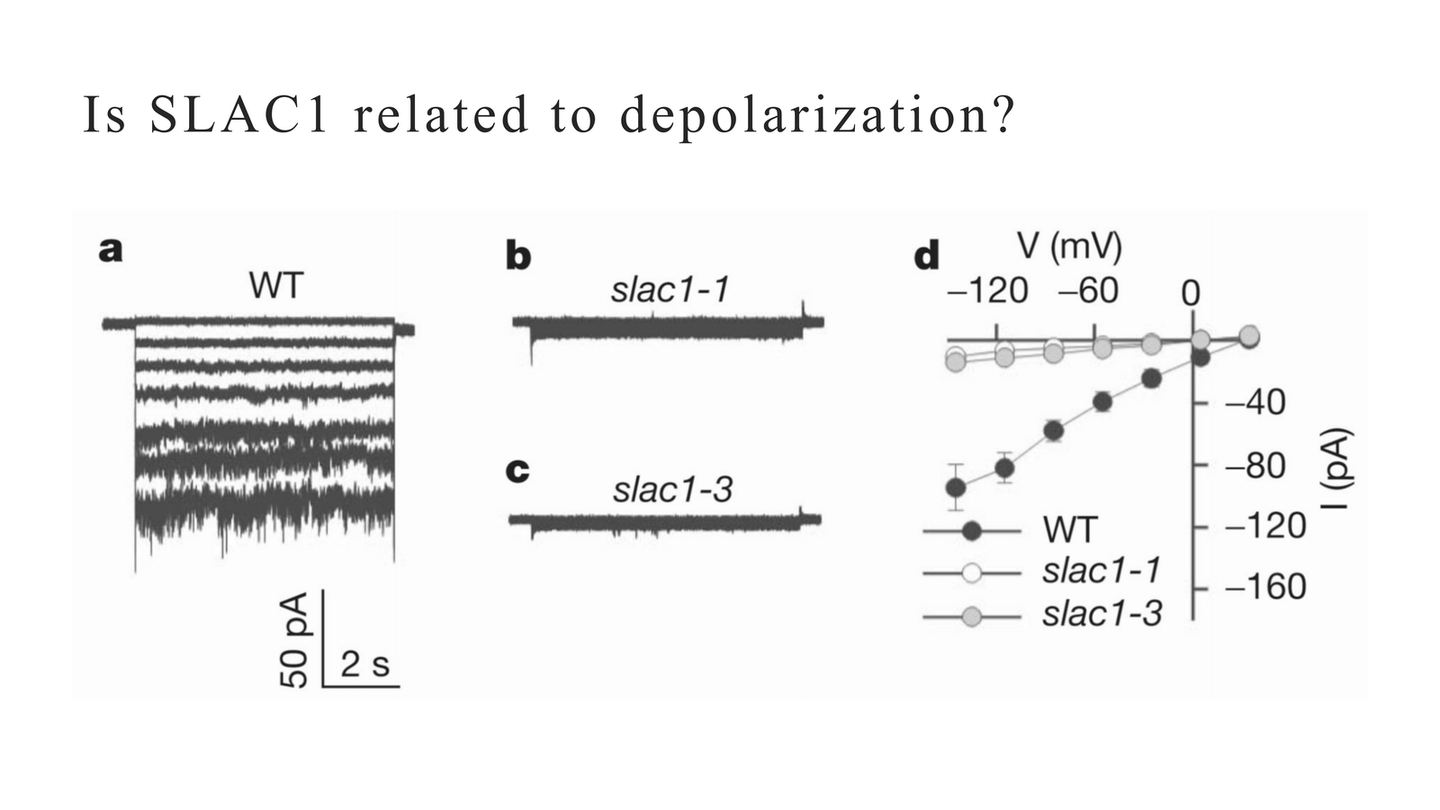
膜片钳:2 µM Ca²⁺ 激活下,slac1-1 与 slac1-3 的 S 型电流几乎消失
换用 ABA 激活(更生理的条件),结论不变。
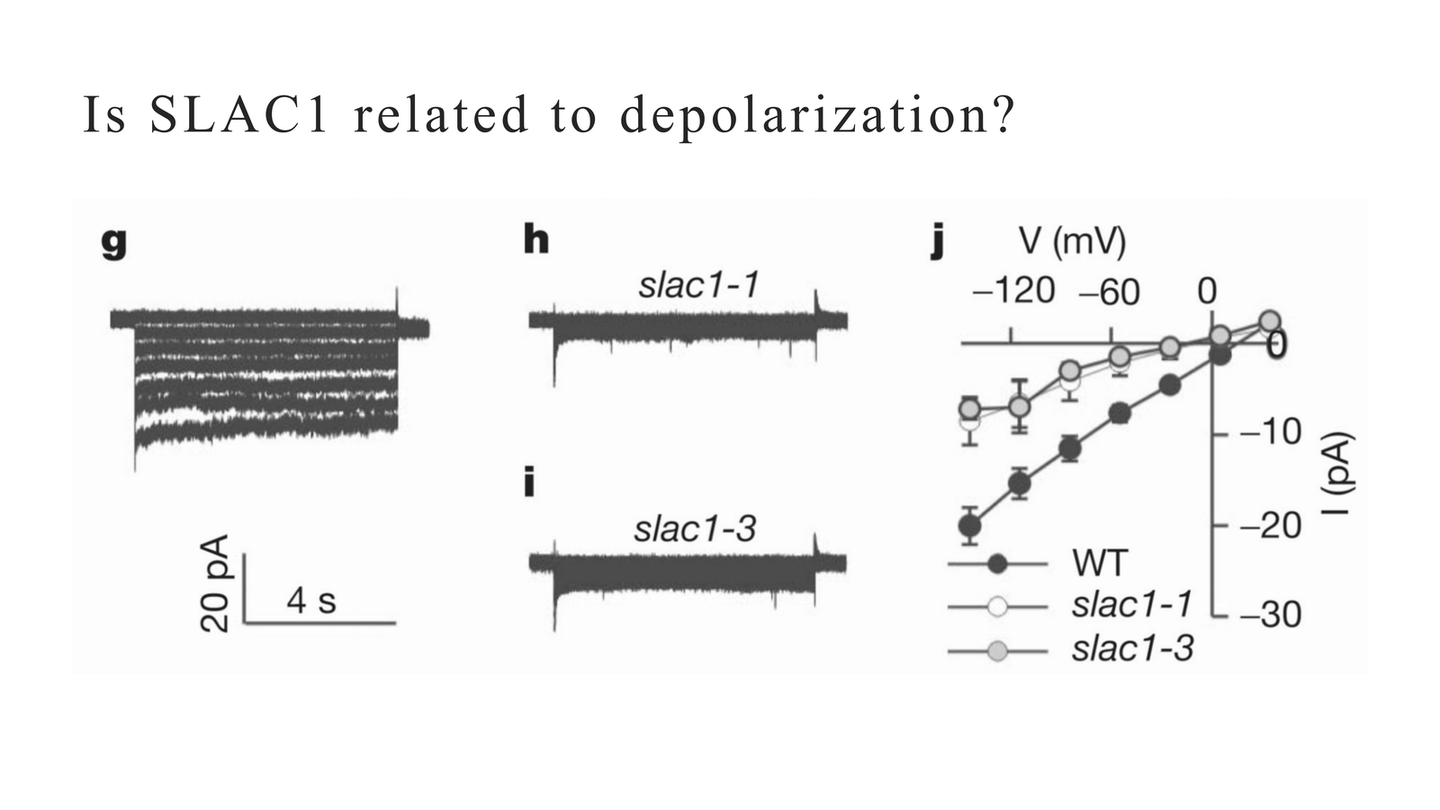
ABA 激活条件下:突变体 S 型电流同样显著降低
而 R 型(rapid,快速型)阴离子通道在突变体中完全正常——说明 SLAC1 的作用是通道类型特异的,也首次从遗传上证明:S 型和 R 型阴离子通道是两套独立的蛋白。
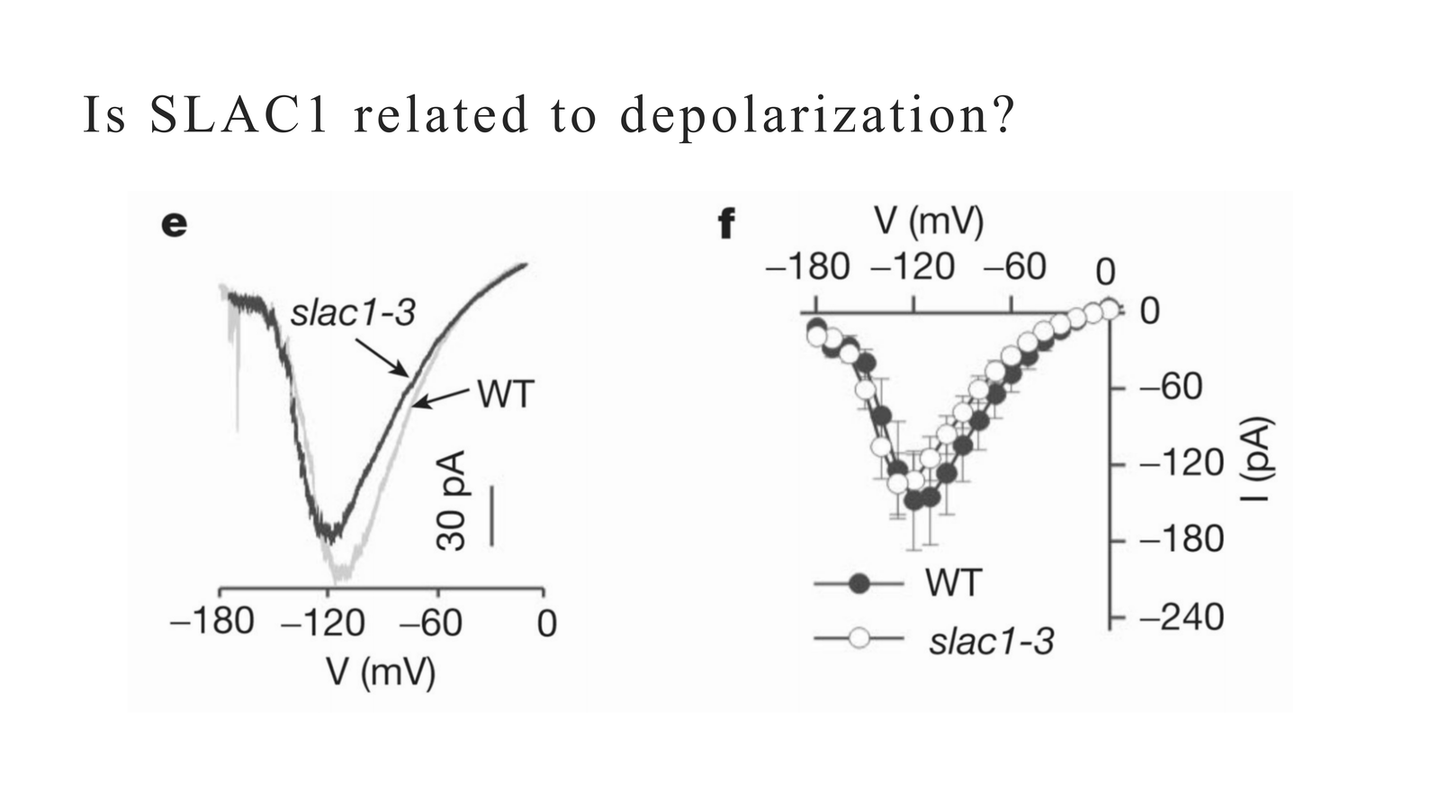
R 型电流在野生型与 slac1-3 之间几乎重合:S/R 是两套独立蛋白
八、最精彩的一笔:必要 ≠ 充分#
整篇文章最值得品味的,是作者措辞的谨慎:他们只说 SLAC1 是 “associated”(相关联的),而不直接说”它就是通道本身”。
为什么?因为”敲掉基因 X,通道功能消失”只说明 X 是必需的——它完全可能是通道的辅助亚基、负责把通道运到膜上的因子,或一个调控蛋白。必要不等于充分。
充分性需要这样验证:把 SLAC1 单独放到没有植物蛋白背景的系统(如爪蟾卵母细胞)中表达,看 S 型电流能否重建。2008 年这篇文章发表时,单独表达 SLAC1 没有重建出电流——所以作者只能谨慎地称它为”关键组成部分”。直到 2009 年,后续研究把 SLAC1 与 OST1 激酶共表达,电流重建成功:SLAC1 需要磷酸化激活才能工作,同时也确认——SLAC1 就是通道孔道本身。
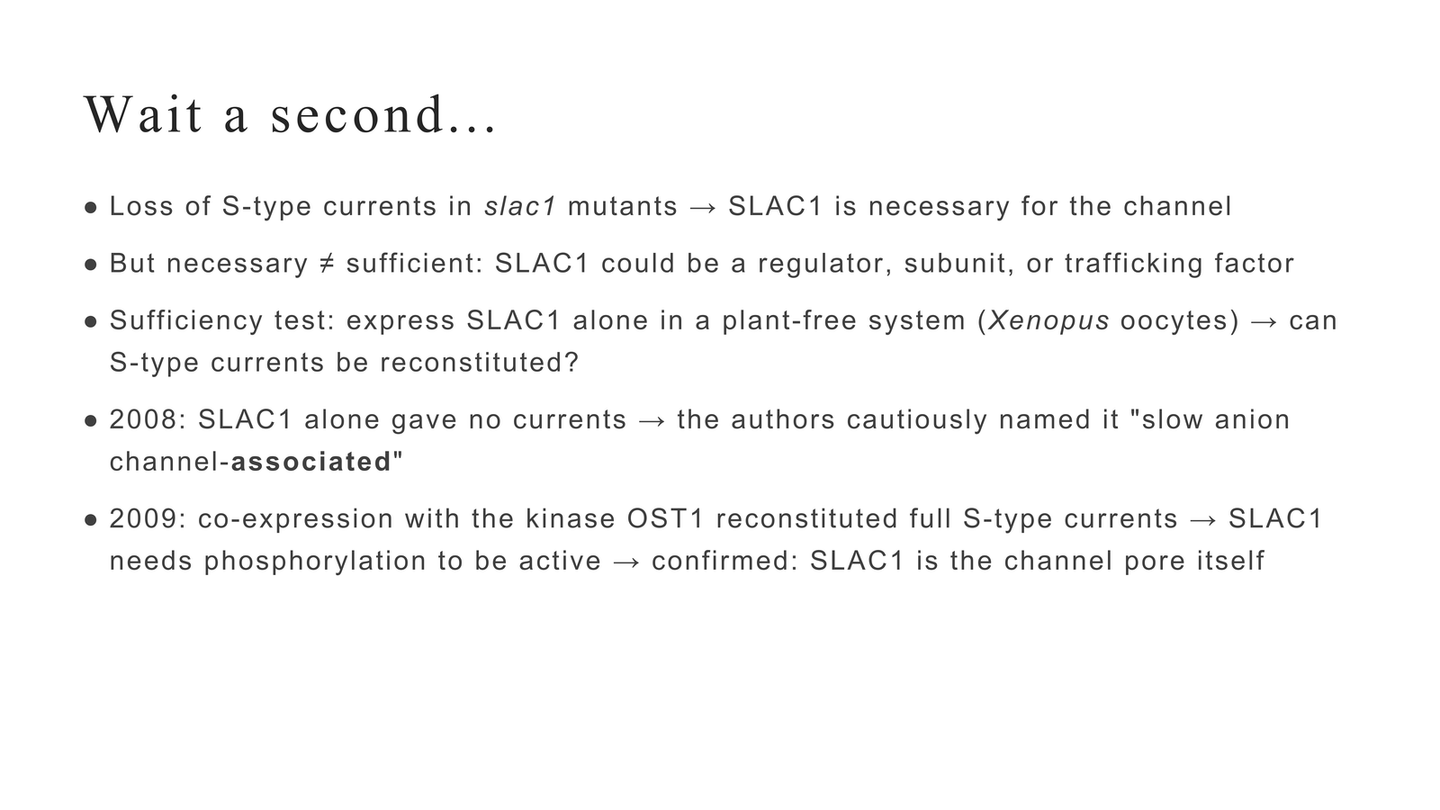
必要 ≠ 充分:2008 年的谨慎命名,2009 年被后续研究凿实
九、一个时代问题:为什么 2008 年不直接测序#
听完整个流程,一个自然的疑问是:又杂交又作图又酶切,这么麻烦,为什么不直接测个序?
这和时代有关。2008 年做全基因组重测序,一是贵、二是慢——拟南芥 1.25 亿 bp 的基因组,第一个序列是 2000 年国际联盟花了好几年才完成的;高通量测序 2006 年才刚诞生,第一个”靠深度测序直接定位突变”的方法(SHOREmap)2009 年才发表,比这篇论文还晚一年。
更根本的问题是:EMS 会在全基因组撒下成百上千个背景突变,测完序拿到一长串 SNP,你也不知道哪个是致病的——筛选逻辑最终还是要靠”纯合表型 ↔ 连锁位点”。所以研究者是把钱花在刀刃上:区间缩到 34 个基因后,靠芯片和 T-DNA 两个廉价信息锁定候选,最后只对一个基因做测序。
2008 年的技术背景下,图位克隆是性价比最优解
如果今天重做:回交几代 + 患病 F2 混池重测序,几周就能搞定。这告诉我们一个道理:
实验方法永远受时代技术的约束,但好的科学逻辑是超越时代的。
十、现场问答实录#
问:图上 S 型通道的差异看着并不明显? 答:那张对比图里差异不大的是 R 型通道——R 型本来就没有差异,这恰恰是为了说明 S/R 是两套东西;S 型的差异在前面那张图里(野生型电流明显下沉、突变体几乎平线),非常显著。
问:找到的是一个点突变,那这个蛋白本身没有了吗? 答:不是没有了,是失去功能。S456F 把侧链性质差异很大的苯丙氨酸换进保守的跨膜区,蛋白还在但丧失功能,效果和敲除类似——T-DNA 插入的 slac1-3/4 就相当于”把基因打断”的情况,表型一致。
问:为什么荧光定位用洋葱表皮,不用保卫细胞? 答:保卫细胞一是很小(十几微米),二是很难做瞬时转化。洋葱表皮是单层大细胞,撕下来直接基因枪转化就能观察,还没有叶绿体自发荧光干扰,是理想的替代材料。
建议:要证明表型确实由这个基因导致,最好展示互补(回复)实验的证据。论文其实在 Fig 1b 做了 slac1-1::SLAC1 基因组互补,回补后失水表型恢复正常——汇报中未来得及展示,这是一个可以补强的点。
附录:逐页讲稿对照#
以下为汇报当天的完整讲稿存档,按 PPT 页码组织。口语化表述保留。
第 1 页|标题页#
大家好,今天我们组汇报的论文是 2008 年发表在《Nature》上的这篇文章。它研究的是一个叫 SLAC1 的蛋白,对植物保卫细胞上的 S 型阴离子通道非常重要。选这篇论文有两个原因:一是它用的模式生物是拟南芥;二是第一单位是芬兰赫尔辛基大学,我对这所学校的植物逆境研究很感兴趣。
第 2 页|保卫细胞是干什么的#
正式开始前先请大家回顾:保卫细胞到底是干什么的?【提问】对,它通过自身的开闭控制气体进出和水分流失,比如蒸腾作用。这里强调一个核心概念:吸水和失水本质上由细胞内溶质分子的数量决定——溶质多、渗透压高,水进入细胞,气孔撑开;溶质少,水外流,气孔关闭。
第 3 页|阴离子通道的重要性(五步流程)#
谁在调控溶质进出?这就要介绍阴离子通道。五步流程:①H⁺-ATPase 维持膜内负电势;②ABA/ROS/NO/CO₂ 引起钙离子内流,激活阴离子通道;③Cl⁻ 外流导致膜去极化——大家还记得去极化是什么吗?电位从负往上抬;④去极化作为开关激活 GORK,K⁺ 外流;⑤溶质流失、失水、气孔关闭。最重点是第③步:阴离子通道是整个级联的 switch。
第 4 页|通道的身份之谜#
通道的存在早有电生理证据,但蛋白身份未知。候选 AtCLCa 被排除:定位在液泡而不是质膜,而且是 H⁺/硝酸根双向 exchanger,不是单向阴离子通道。所以这个通道到底是谁?这就是本文要回答的问题。
第 5 页|EMS 诱变与臭氧筛选#
EMS 即甲基磺酸乙酯,让鸟嘌呤烷基化,复制时错配为与 T 配对,造成 G:C→A:T 点突变。M1 代突变是杂合的,要自交得到 M2 再筛。筛选用臭氧——它诱导 ROS,防御有缺陷的植株叶片会出现细胞死亡黄斑;再用离子渗漏定量细胞死亡。突变体最初叫 rcd3(radical-induced cell death),本文重新命名为 slac1——slow anion channel-associated,S 就是 slow。
第 6 页|先确认:这个基因真的存在吗#
定位之前先问:表型是一个基因还是多基因导致的?与野生型杂交,后代 3/4 正常、1/4 长斑——单基因隐性突变。同时臭氧敏感与失水表型共分离,说明由同一基因控制。从此可以叫它 slac1-1,指这个具体的突变等位基因。
第 7 页|slac1-1 与气孔有没有关系#
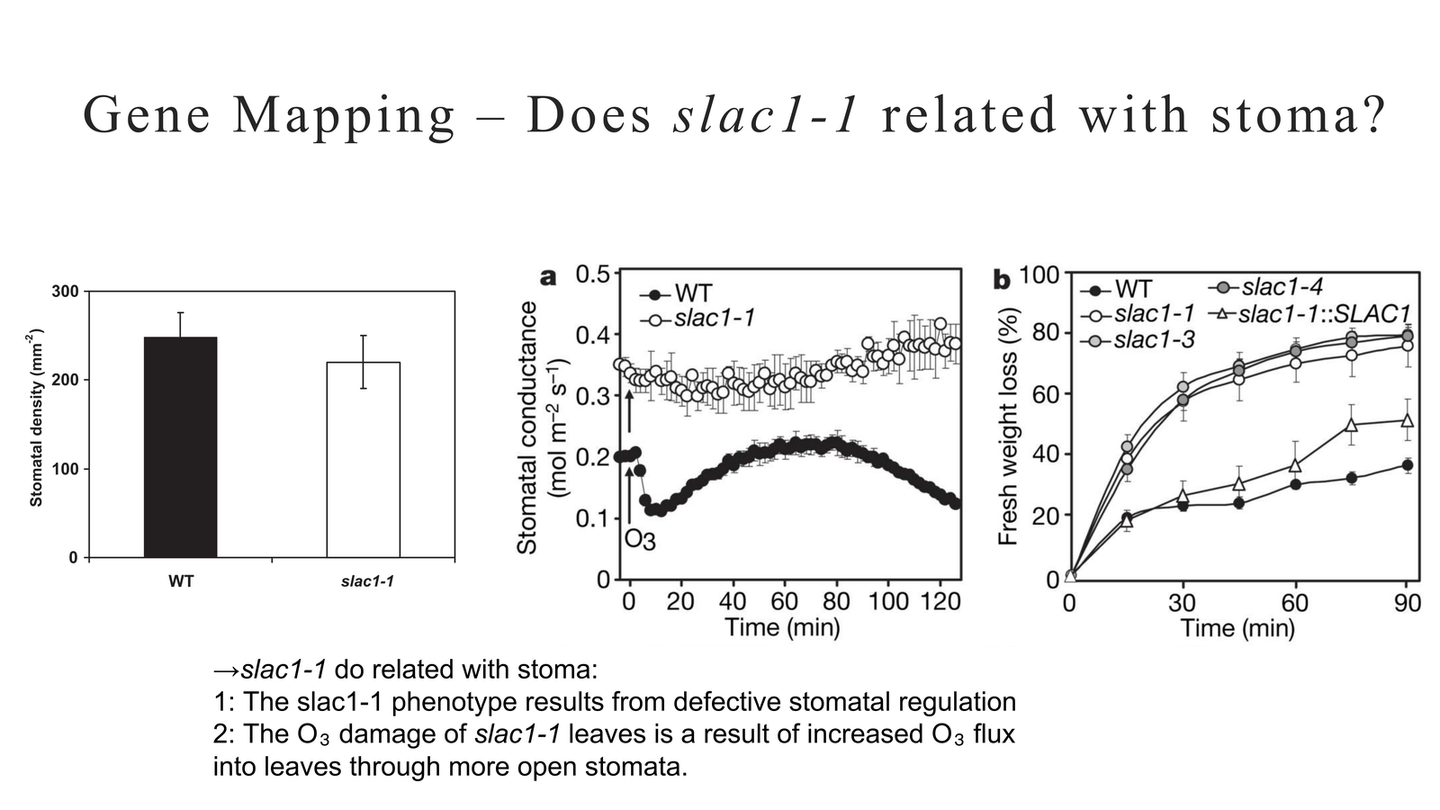
发蔫也可能是吸水被阻断,不一定与气孔有关。先排除变量:气孔密度无差异;但突变体气孔导度明显更高——气孔关不上。离体叶片 90 分钟:突变体失水 70–80%,野生型约 30%。结论:表型源于气孔调控缺陷,臭氧伤害是因为更多 O₃ 从关不上的气孔进入。
第 8 页|建立作图群体#
Col-0 突变体 × Ler(波兰生态型)杂交,F1 自交得 F2。两个生态型间有大量天然 SNP 当”路标”。减数第一次分裂前期发生交叉互换,F2 染色体成为马赛克。关键问题:表现出失水/斑点的 F2 在 slac1 位点上基因型有什么特点?【提问】必须是纯合——隐性突变,且纯合片段来自突变亲本 Col-0。最终筛出 572 株患病 F2。
第 9 页|CAPS 标记定位#
以 EcoRI 为例:识别 GAATTC 并切开;Ler 背景中变成 GATTTC 就切不动。Col 纯合 = 300+200 bp 两条带,杂合 = 三条带,Ler 纯合 = 500 bp 一条带。标记离位点远 → 三种基因型约 1:2:1;越近越偏向 Col/Col;就在位点上 → 572 株全部 Col/Col。最终用 SGCSNP9727 和 SGCSNP9735 把区间夹到 1 号染色体 116.5 kb,含 34 个基因。
第 10 页|锁定 At1g12480#
我们研究的是哪个细胞?【提问】保卫细胞。34 个基因里只有 At1g12480 在保卫细胞表达量比叶肉细胞高 10 倍以上,GUS 染色与芯片数据吻合。名字含义:At=拟南芥,1=1 号染色体,g=gene,12480=序号。订购 T-DNA 插入株系验证:两个株系表型与 slac1-1 一致(表型复制,即 slac1-3/4)。Sanger 测序发现 C→T:第 456 位丝氨酸(TCT)→ 苯丙氨酸(TTT),即 S456F,蛋白失能,证据链闭环。蛋白建模显示 10 个预测跨膜结构域。
第 11 页|为什么选择拟南芥#
四大优势:生命周期短(几个月拿到 572 株 F2);生态型多(Col/Ler 提供天然 SNP);基因组早已测完(区间一定,34 个候选立刻列出);公共 T-DNA 库可直接订种子。
第 12 页|SLAC1 定位在细胞膜上吗#
注意这不是保卫细胞,是洋葱内表皮细胞。SLAC1::GFP 融合 + 膜染料 FM4-64 共染,merge 重合——初步提示质膜。决定性证据是质壁分离:质膜被锚定位点拉住形成赫氏丝,荧光出现在细丝上,说明蛋白跟着质膜走而非附着在壁上。SLAC1 确认定位于质膜。
第 13–14 页|从基因型回到表型:环境刺激#
之前的路线是”从表型到基因型”,现在反过来。光照变化时野生型气孔导度快速下降又回升,突变体(浅色,slac1-3 就是订购的 T-DNA 株系)响应迟钝;湿度、CO₂(400→800 ppm)也一样:野生型迅速关闭,突变体几乎不动。突变体失去了对气孔开度的正常调控。
第 15–16 页|从基因型回到表型:信号分子#
还记得五步流程里激活钙离子通道的因素吗?ABA、ROS。ABA 和 H₂O₂ 处理下,野生型响应都比突变体快。第 16 页的 SNP 是硝普钠——一氧化氮供体,不是单核苷酸多态性。纵轴 aperture 本义”光圈”,这里指气孔开度。NO 和 Ca²⁺ 脉冲结果相同:野生型关闭快,突变体迟钝。但注意:这些全是间接证据,必须直接看电生理。
第 17 页|膜片钳:S 型电流消失了#
全细胞膜片钳:每条曲线是一个测试电压的记录,越靠下电压越负,往下沉得越多 = 内向电流越大(等价于阴离子外流)。电流慢爬升、持续不衰减——“S-type = slow”的指纹。标尺 50 pA / 2 s。2 µM Ca²⁺ 激活下,野生型电流明显,slac1-1 和 slac1-3 几乎全是平线;I–V 曲线汇总同样。一个点突变、一个 T-DNA 插入,表现一致——核心证据。
第 18 页|R 型通道不受影响#
阴离子通道有 S 型(slow)和 R 型(rapid)两类。R 型电流在野生型和 slac1-3 间几乎重合——SLAC1 只影响 S 型,作用具有通道类型特异性;S 型和 R 型是两套独立的蛋白。
第 19 页|换一种激活条件:ABA#
第 17 页用钙离子(直接激活),这页换 ABA(间接、生理的激活条件,要靠细胞自身信号通路)。结果一样:野生型有明显 S 型电流(标尺 20 pA / 4 s,比高钙激活小,因为胞内信号机器有损耗),突变体电流显著降低。SLAC1 是 Ca²⁺ 和 ABA 两条通路的共同下游,直接作用于阴离子外流层面。
第 20 页|结论#
大家觉得我们得到了什么结论?【提问】三条:①SLAC1 是植物 S 型阴离子通道的关键组分——首个被鉴定的植物质膜阴离子通道基因;②它是 ABA、CO₂、Ca²⁺、ROS、NO 多条逆境信号通路共同的下游执行者;③S 型和 R 型阴离子通道是两套独立的蛋白。
第 21 页|Wait a second:必要 ≠ 充分#
为什么文章只敢说 “associated”?因为”敲掉基因、通道功能消失”只说明必需——它也可能是辅助亚基、运输因子或调控蛋白。充分性验证:把 SLAC1 单独放到爪蟾卵母细胞这类无植物背景的系统里表达。2008 年单独表达没有重建出电流,所以作者谨慎命名;2009 年与 OST1 激酶共表达重建成功——SLAC1 需要磷酸化激活,同时确认它就是通道孔道本身。
第 22 页|What if:为什么当年不直接测序#
一是贵二是慢:拟南芥 1.25 亿 bp,第一个基因组 2000 年才完成;高通量测序 2006 年才诞生,第一个测序定位突变的方法 2009 年才发表。更根本的是:EMS 撒下成百上千个背景突变,测完序也不知道哪个致病,筛选逻辑仍要靠连锁。他们是把钱花在刀刃上:最后只测一个基因。今天重做:回交 + 混池重测序,几周搞定。实验方法受时代约束,好的科学逻辑超越时代。
记录整理:本博客正文按科学故事线重组自当天讲稿;附录为逐页讲稿存档。 论文引用:Vahisalu T., Kollist H., Wang Y.-F., et al. SLAC1 is required for plant guard cell S-type anion channel function in stomatal signalling. Nature 452, 487–491 (2008).